短时高强度供能的生理基础与能量代谢路径
人体在进行短跑、举重或跳跃等爆发性动作时,主要依赖磷酸原系统提供即时能量。这一过程发生在细胞内的肌浆网中,通过肌酸磷酸(PCr)将高能磷酸键转移给三磷酸腺苷(ATP),使其迅速分解为二磷酸腺苷(ADP)并释放能量。由于不需要经过复杂的氧化呼吸链,这种供能方式的速度极快,能在数秒内维持最高强度的肌肉收缩。然而,肌酸磷酸的储备量有限,通常在持续高强度运动10至15秒后便会接近耗尽,随后机体需通过糖酵解系统接续供能,导致功率输出出现自然衰减。
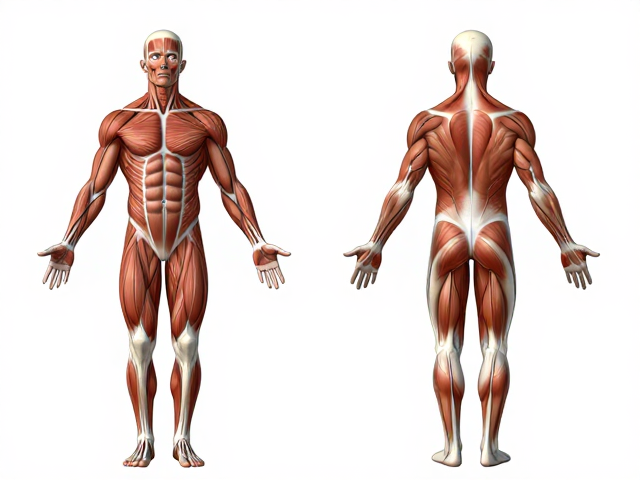
肌肉纤维的类型决定了爆发力的生理上限。快肌纤维(II型纤维)富含肌酸磷酸和糖原,具备强大的收缩速度和力量,是爆发力产生的物质基础。相比之下,慢肌纤维(I型纤维)氧化能力强但收缩速度慢,主要负责耐力活动。在短时高强度场景下,快肌纤维中肌球蛋白重链同种异型物的表达水平直接影响横桥循环的速度,进而决定肌肉缩短和产生力量的效率。不同个体间快肌纤维比例的差异,构成了爆发力表现的生物学底色,这也是为何经过专项训练的运动员能调动更多快肌纤维参与工作的关键所在。
神经驱动效率与肌肉间协调机制
爆发力不仅取决于肌肉本身的横截面积,更高度依赖于中枢神经系统的募集能力。运动单位由一个运动神经元及其支配的所有肌纤维组成,神经系统通过调节运动神经元发放冲动的频率和募集的运动单位数量来控制力量输出。在爆发性动作中,高位级的神经驱动表现为极高的放电频率,能够瞬间激活大量高阈值的快肌运动单位。这种神经驱动的“同步化”程度至关重要,若多个运动单位能同时收缩而非分散工作,肌肉产生的峰值力量将显著增加。
除了单块肌肉的发力,多块肌肉间的协同与拮抗关系会影响最终的动作表现。在跳跃或投掷动作中,主动肌负责产生动力,而拮抗肌需要迅速放松以减少阻力,这一过程称为交互抑制。如果拮抗肌在发力阶段仍然保持紧张,就会像踩刹车一样抵消主动肌的力量,降低爆发效率。此外,深层稳定肌群提供的近端稳定性是远端肢体爆发输出的前提,核心区域的刚性不足会导致力量传递过程中的能量泄漏,使得最终作用于外部物体的动能大幅降低。
力量-速度关系与功率输出特性
肌肉在收缩过程中产生的力量与收缩速度之间存在严密的倒置关系,这一力学特性被称为力量-速度曲线。当肌肉以极快速度缩短时,其产生的张力会显著下降;反之,在对抗极大阻力下的等长收缩或慢速向心收缩中,肌肉能产生最大的张力。爆发力本质上是力量与速度的乘积,即功率。因此,提升爆发力并非单纯增加最大力量或单纯提高动作速度,而是需要在力量-速度曲线上寻找最佳平衡点,使肌肉在较高速度下仍能维持可观的张力输出。
实际运动场景中,不同动作对力量-速度曲线的需求各不相同。例如,深蹲主要涉及较大负荷和较慢的速度,侧重于曲线左侧的最大力量区域;而立定跳远则需要极高的速度,侧重于曲线右侧的高速区域。通过特异性训练,可以改变肌肉在曲线上的工作点。抗阻训练能提升曲线左侧的最大力量上限,从而间接提升曲线右侧的功率输出潜力;而增强式训练或速度训练则能优化曲线右侧的快速发力能力。理解这一力学机制,有助于在训练中精确匹配负荷与速度,避免无效刺激。
训练适应与神经肌肉控制的重塑
长期的高强度爆发力训练会迫使神经肌肉系统发生适应性改变。最显著的变化体现在运动皮层和脊髓水平的神经驱动优化,表现为运动单位放电频率的提升和不同肌群间协调性的增强。同时,肌肉内部也会发生结构性适应,如肌浆网钙离子释放和回收速率的加快,以及肌球蛋白重链异构型的表达改变,这些微观层面的调整使得肌肉能够更快完成兴奋-收缩耦联,缩短收缩潜伏期。
训练还能改善肌肉内储存物质的代谢效率。虽然肌酸磷酸储备有限,但通过训练可以提高其再合成速率,使得在间歇性高强度运动中能量恢复更快。此外,结缔组织如肌腱的刚度也会因训练而增加,这有助于在快速伸缩循环中更高效地储存和释放弹性势能。这种生物力学层面的优化,使得肌肉像弹簧一样,在受到快速拉伸后能迅速反弹,进一步提升了短时高强度下的动作效率和整体爆发表现。